

1. 서 론
2. 재료 및 방법
추출물 제조
Pancreatic lipase 저해 활성 측정
3T3-L1 세포 배양
세포 생존율 측정
3T3-L1 전지방세포의 분화 유도
지방세포 내 중성지방 축적량 평가
Reactive oxygen species (ROS) 생성량 측정
실시간 중합효소 연쇄반응
통계 분석
3. 결과 및 고찰
긴까막살 추출물의 pancreatic lipase 저해 활성
긴까막살 추출물이 3T3-L1 세포 생존율에 미치는 영향
긴까막살 추출물의 지방세포형성 억제 효능
긴까막살 추출물의 지방세포 내 ROS 생성 억제 효능
긴까막살 추출물에 의한 지방세포 내 유전자 발현 변화
4. 결 론
1. 서 론
지방조직(adipose tissue)은 식이로 섭취되거나 체내에서 합성된 지방(fat)을 저장하여 에너지를 공급하고 대사, 체온 등을 조절하여 신체의 항상성 유지에 관여한다(Björntorp 2000; Dragoo et al. 2021). 그러나 생활습관의 변화, 유전적, 생리적 요인 등의 변화로 인한 과도한 지방의 축적은 비만(obesity)을 유발하며 비만은 단순한 체중 증가를 넘어 심혈관계 질환, 대사성 질환 등을 일으키는 주요 위험 인자로 알려져 있다(Busebee et al. 2023). 대한비만학회에서 보고한 자료에 따르면, 2023년 국내 비만 유병률은 38.4%로 2014년 31.1% 대비 약 1.2배 증가하였으며 비만 환자들에서 비만이 아닌 사람들 보다 고혈압, 고콜레스테롤혈증, 당뇨병, 대사 증후군, 골관절염, 폐쇄성 수면 무호흡증, 만성 신장질환 동반 비율이 높은 것으로 보고되었다(Kim et al. 2026). 이외에도 비만은 신체적 문제뿐만 아니라 우울증, 감정장애 등의 심리·정신적 문제(Luppino et al. 2010) 및 생산성 저하, 조기 사망 등으로 인한 사회·경제적 문제로 이어짐에 따라 적절한 치료와 관리가 필수적이다(Ra et al. 2024).
비만 치료를 위해 식이조절과 운동요법을 기본으로 하는 생활습관 개선의 비약물요법이 기본적으로 권장되나, 그럼에도 불구하고 체중이 감소하지 않을 경우 약물치료를 병행할 수 있다(Son 2021). 그러나, 중추신경계 작용 약물인 식욕억제제를 비롯하여 지방흡수억제제, GLP-1 수용체 효능제 등의 비만 치료 약물은 장기 복용에 따른 부작용과 안전성의 문제가 대두되고 있음에도 불구하고(Kang and Park 2012; Choi et al. 2023) 투약을 중단할 경우 체중이 다시 증가하는 것으로 나타나 약물을 지속적으로 사용할 수밖에 없는 실정이다(Wilding et al. 2022). 이러한 한계를 극복하기 위하여 장기간 섭취에도 안전한 천연소재를 활용한 항비만 활성 연구들이 활발히 진행되고 있다(Hwang et al. 2014; Choi et al. 2022).
해조류(algae)는 해양 생태계에 풍부하게 존재하는 대표적인 천연 생물자원으로 육지 식물에서 얻을 수 없는 미네랄을 비롯하여 식이섬유, 비타민, 무기질, 단백질 등을 포함하고 있어 각종 질병의 예방 및 개선을 위한 기능성 소재로 각광받고 있다(Kim and Cho 2022). 해조류와 그 유효성분을 이용한 항비만 연구로는 홍조류인 김(Porphyra yezoensis)에 존재하는 porphyran에 의해 고지방식이를 급여한 랫드에서 혈중 총콜레스테롤, LDL-콜레스테롤, 간 내 총 콜레스테롤 농도가 유의하게 감소된 것으로 보고된 바 있다(Lee et al. 2010). 또한, 녹조류에 속한 잎파래(Enteromorpha linza)는 무기질이 풍부하고 폴리페놀 성분을 다량으로 포함하고 있으며 지방세포의 분화를 억제함으로써 항비만 활성을 나타내었으며(Choi et al. 2013) 갈조류인 괭생이모자반(Sargassum horneri)은 지방분해효소의 활성과 지방세포의 분화를 억제하는 것으로 보고되었다(Hong et al. 2022). 뿐만 아니라, 갈조류에 포함된 대표 물질인 후코이단은 혈액의 응고를 억제하여 혈행 개선 효과가 있으며(Pereira et al. 1999) 알긴산은 고콜레스테롤 식이를 섭취한 마우스에서 체중 감소와 더불어 장기 내 지방 중량을 감소시켜 비만 예방 효능이 있음이 보고되었다(Back et al. 2014).
긴까막살(Grateloupia elata, G. elata)은 홍조류에 속하는 해조류로, 조간대 중부 내지 하부의 암반 위에서 자라나며 우리나라 동해안과 남해안, 그리고 제주도에 주로 분포하고 있다. 긴까막살의 높이는 10–30 cm이며, 체색은 선홍색 내지 암적색이고, 식물체 조직은 연골질이다. 개체는 반상근으로부터 모여나며 주지는 편압되고 중륵이 없고, 폭은 1–2 mm로, 차상으로 분지한다(Boo and Ko 2012; Nam and Kang 2013). 다른 해조류에 비해 기능성 소재로 사용된 사례나 기능성을 뒷받침할 생리활성에 대한 연구는 상대적으로 미미하나 최근 긴까막살 추출물의 항산화 활성과 피부세포에서의 항노화 효능이 보고되었다(Bak et al. 2025). 본 연구에서는 긴까막살 추출물의 항비만 효능을 평가하여 기능성 소재로서의 활용 가치를 높이고자 하였고 이를 위해 지방 흡수에 관여하는 pancreatic lipase 활성과 지방세포 분화에 따른 활성산소종 생성량, 지질 축적량 및 분화와 관련된 유전자 발현의 변화를 평가하였다.
2. 재료 및 방법
추출물 제조
긴까막살은 세절된 형태의 건조 원물을 파라제주(제주특별자치도 제주시)에서 구입하여 사용하였다. 긴까막살을 100% 에탄올에 침지시켜 실온에서 24시간 동안 추출하였으며 동일한 과정을 2번 반복한 후 여과지(Cytiva, Marlborough, MA, USA)를 이용하여 여과하였다. 이후 감압 농축기(EYELA, Tokyo, Japan)를 이용하여 농축한 후 진공동결건조기(iLShinBioBase, Dongducheon, South Korea)를 통해 동결건조하여 -20°C에 보관하였다. 긴까막살 추출물은 dimethylsulfoxide (DMSO, Junsei Chemical, Tokyo, Japan)를 이용하여 100 mg/mL 농도의 stock으로 제조한 후 증류수 또는 배양액으로 희석하여 실험에 사용하였다.
Pancreatic lipase 저해 활성 측정
긴까막살 추출물의 pancreatic lipase 저해 활성은 Pinto et al. (2024)의 방법을 일부 수정하여 측정하였다. 먼저 pancreatic lipase (Sigma-Aldrich, St. Louis, MO, USA)는 Tris-HCl buffer (50 mM Tris-HCl, 150 mM NaCl, 1 mM EDTA, 10 mM MOPS, pH 7.6)에 0.1 mg/mL의 농도로 용해하여 사용하였다. Pancreatic lipase 90 μL와 긴까막살 추출물(25, 50, 100, 200 μg/mL) 5 μL를 혼합하여 37°C에서 15분간 반응시킨 후 10 mM p-nitrophenyl butyrate (p-PNB, Sigma-Aldrich) 5 μL를 첨가하여 추가로 37°C에서 5분간 반응시켰다. 생성된 p-nitrophenol의 흡광도를 microplate reader (LTek, Seongnam, South Korea)를 사용하여 405 nm에서 측정하였다. 양성 대조군으로는 orlistat (Sigma-Aldrich)를 사용하였으며 대조군을 포함한 모든 실험군에는 0.2% DMSO가 포함되도록 처리하였다.
3T3-L1 세포 배양
3T3-L1 전지방세포는 한국세포주은행(Korean Cell Line Bank, Seoul, South Korea)에서 분양을 받아 실험에 사용하였다. 3T3-L1 세포는 10% fetal bovine serum (FBS, GeneDEPOT, Barker, TX, USA)과 1% penicillin-streptomycin (Gibco, Grand Island, NY, USA)이 포함된 Dulbecco’s Modified Eagle medium (DMEM, GeneDEPOT) 배지를 사용하여 37°C, 5% CO2 조건에서 배양하였다. 세포의 밀도가 약 80%에 도달하였을 때 0.25% trypsin-EDTA (Gibco)를 이용하여 계대배양을 진행하였다.
세포 생존율 측정
긴까막살 추출물의 세포독성을 평가하기 위해 MTT (3-(4,5-dimethyl-2-thiazolyl)-2,5-diphenyl-2H-tetrazolium bromide) assay를 수행하였다. 먼저 3T3-L1 세포를 96 well plate에 1×10⁴ cells/well의 밀도로 분주하고 24시간 동안 배양한 후 긴까막살 추출물을 25, 50, 100, 200 μg/mL 농도로 처리하여 48 또는 72시간 동안 배양하였다. 이후 모든 well에 MTT 시약(5 mg/mL, Sigma-Aldrich) 10 μL를 첨가하여 37°C에서 3시간 동안 반응시켰다. 현미경 하에서 생성된 formazan 결정을 확인하고 배양액을 제거한 후 DMSO (Junsei Chemical) 100 μL를 첨가하여 formazan을 용해시켰으며 microplate reader (LTek)를 이용하여 540 nm에서의 흡광도를 측정하였다. 시료에 포함된 DMSO의 농도가 세포 생존율에 미치는 영향을 배제하기 위해, 모든 실험군에는 0.2% DMSO가 동일하게 포함되도록 처리하였다.
3T3-L1 전지방세포의 분화 유도
3T3-L1 전지방세포의 분화는 Shim et al. (2017)의 방법에 따라 유도하였다. 먼저 3T3-L1 세포를 12 well plate에 2×10⁵ cells/well의 밀도로 분주하여 100% confluency에 도달할 때까지 배양하였으며 이후 48시간 동안 추가로 배양하였다. 3T3-L1 전지방세포의 지방세포로의 분화를 유도하기 위해 0.5 mM 3-isobutyl-1-methylxanthine (IBMX, Sigma-Aldrich), 1 μM dexamethasone (DEX, Sigma-Aldrich), 1 μg/mL insulin (Sigma-Aldrich)을 DMEM에 혼합하여 분화 유도 배지(MDI)를 제조하였고 48시간 동안의 추가 배양 후 분화 유도 배지로 교체하여 분화를 개시하였다. 분화 유도 2일째, 분화 유도 배지를 제거하고 1 μg/mL insulin이 포함된 DMEM으로 교체하였으며 이후 2일마다 배지를 교체하여 총 7일간 지방세포로의 분화를 유도하였다. 긴까막살 추출물은 7일 간의 분화 유도 기간 동안 100 또는 200 μg /mL 농도로 배양액에 혼합하여 처리하였으며 분화를 유도하지 않은 음성대조군에는 0.2% DMSO가 포함된 DMEM을 7일간 처리하였다.
지방세포 내 중성지방 축적량 평가
지방세포로의 분화가 유도된 3T3-L1 세포 내 축적된 중성지방을 정량화 하기 위해 Oil red O 염색을 수행하였으며 Hwang et al. (2014)의 방법을 참고하였다. 분화가 유도된 3T3-L1 세포를 0.01 M phosphate buffered saline (PBS, pH 7.4)로 세척한 다음 4% paraformaldehyde 용액(4% PFA in 0.1 M phosphate buffer, pH 7.4)을 추가하여 30분간 고정시켰다. 이후 PBS로 세척한 후 Oil red O (Sigma-Aldrich) 용액을 첨가하여 실온에서 10분간 염색하였으며 현미경을 통해 염색된 지방구를 관찰하였다. 축적된 중성지방을 정량화하기 위해 isopropanol 200 μL를 추가하여 지방구 내 염색된 Oil red O를 용출시켜 microplate reader (LTek)를 이용하여 500 nm에서 흡광도를 측정하였다.
Reactive oxygen species (ROS) 생성량 측정
3T3-L1 세포의 분화 과정에서 발생되는 ROS 생성량을 2',7’-dichlorohydrofluorescein diacetate (DCFH-DA) assay로 측정하였다(Kim and Xue 2020). 간략하게는, 분화 유도가 끝난 3T3-L1 세포에 10 μM DCFH-DA (Sigma-Aldrich)를 추가하여 30분간 배양한 후 생성물의 형광을 형광현미경으로 관찰하였다. 이후 세포를 PBS로 세척한 후 RIPA buffer (50 mM Tri-HCl, 150 mM NaCl, 5 mM sodium fluoride, 1 mM EDTA, 0.1% sodium dodecyl sulfate, 0.5% sodium deoxycholate, 1% triton X-100)를 추가하여 세포를 용해시켰다. 세포 내 생성물의 감도는 LUX multimode microplate reader (Thermo Fisher Scientific, Waltham, MA, USA)를 이용하여 485/530 nm (excitation/emission)에서 측정하였으며 결과값은 단백질 양으로 보정하여 나타내었다.
실시간 중합효소 연쇄반응
분화 유도가 끝난 3T3-L1 지방세포의 total RNA를 추출하기 위해 MiniBEST Universal RNA Extaction Kit (TaKaRa, Kyoto, Japan)를 이용하였으며 제조사의 매뉴얼에 따라 수행하였다. 추출한 RNA는 미량분광광도계(Nabi, Microdigital, Seongnam, South Korea)을 이용하여 정량한 후 PrimeScriptTM RT master mix (TaKaRa)와 혼합하여 cDNA로 합성하였다. 이후 cDNA를 TB Green® Premix Ex Taq II (TaKaRa)와 PPAR-γ, C/EBPα, SREPB-1c, FAS, DGAT2, aP2 각각의 primer와 혼합하여 95°C에서 5초, 60°C에서 30초, 72°C에서 30초 구간을 40회 반복하여 반응을 증폭시켰다. 각 유전자의 발현 수준은 β-actinmRNA 발현량을 기준으로 하여 상대정량으로 비교하였으며 사용한 primer는 Table 1에 나타내었다.
Table 1.
The primer sequences used for quantitative real time PCR
통계 분석
모든 실험결과는 평균±표준오차로 나타내었으며 GraphPad Prism (GraphPad Software Inc., San Diego, CA, USA)을 이용하여 통계 분석하였다. 통계적 유의성은 One-way analysis of variance (ANOVA)를 이용하여 평가하였으며 Bonferroni’s Multiple Comparison Test 사후 검정 후 p < 0.05 이하인 경우 통계적 유의수준을 나타내었다.
3. 결과 및 고찰
긴까막살 추출물의 pancreatic lipase 저해 활성
식이로 섭취된 지방의 대부분을 차지하는 중성지방(triglyceride)은 췌장에서 십이지장으로 분비되는 lipase에 의해 지방산(fatty acid)과 모노글리세라이드(monoglyceride)로 분해되어 소장 점막세포로 흡수된다. 이와 같은 pancreatic lipase의 활성 억제는 지방의 흡수를 억제하여 체지방 감소에 도움을 줄 수 있다(Subramaniyan and Hanim 2025). 긴까막살 추출물의 pancreatic lipase 저해 활성을 평가한 결과, 긴까막살 추출물 25, 50, 100, 200 μg/mL에 의해 pancreatic lipase 활성이 각각 30.36%, 32.01%, 40.26%, 45.22% 억제되었다(Fig. 1). 이러한 긴까막살 추출물의 pancreatic lipase 저해 활성은 양성대조군으로 사용한 orlistat의 효능보다 높지는 않았지만 200 μg/mL 농도에서는 orlistat 효능의 약 81.56%에 달하였다. 또한, 해조류의 pancreatic lipase 저해 활성을 보고한 Kim et al. (2012) 선행연구와 비교해보면 홍조류에 속하는 덤불가시우무(Hypnea flexicalis) 추출물 100 μg/mL에서의 2.7%, 갈래곰보(Meristotheca papulose) 추출물 100 μg/mL에서의 6.4% 억제율보다 긴까막살 추출물 100 μg/mL에서의 효능이 더욱 높았으며, 특히 긴까막살과 같은 도박과(Halymeniaceae)에 속하는 개도박(Pachymeniopsis lanceolata) 추출물 100 μg/mL에서의 12.3% 억제율보다도 긴까막살 추출물의 pancreatic lipase 저해 활성이 우수함을 확인하였다. 긴까막살 에탄올 추출물에는 플라보노이드류가 포함된 것으로 알려져 있으며(Bak et al. 2025) 플라보노이드 화합물은 lipase의 결합부위와 리간드 결합을 이룸으로써 lipase 활성을 저해함이 분자 도킹(molecular docking) 연구로 밝혀졌다(Tran et al. 2024; Modanwal et al. 2025; Rocha et al. 2025). 이러한 결과는 긴까막살 추출물의 pancreatic lipase 활성 저해와 더불어 추출물 내 포함된 유효성분 규명에 대한 추가적인 연구의 필요성을 제시한다.
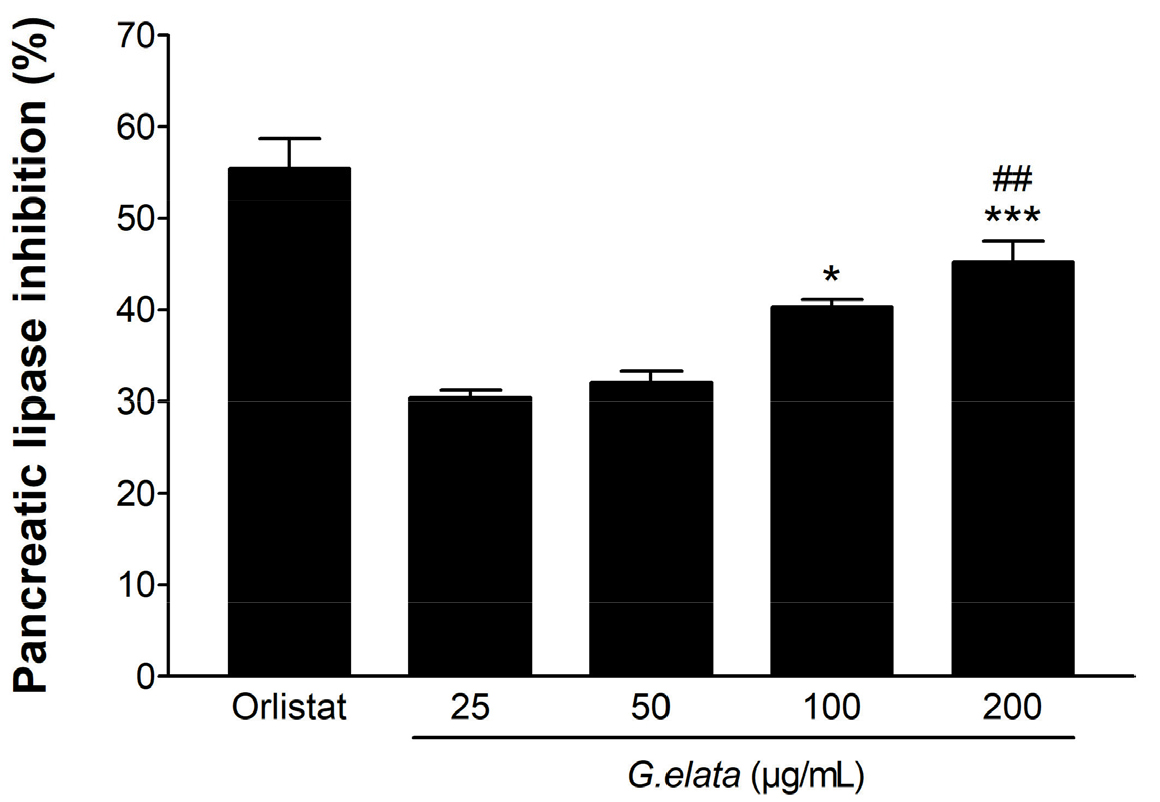
Fig. 1.
Inhibitory effect of the G. elata extract on pancreatic lipase activity. Pancreatic lipase was treated with various concentrations of the G. elata extract (25, 50, 100, 200 μg/mL) or orlistat as a positive control. The extract inhibited the enzyme activity in a dose-dependent manner. *p < 0.05, ***p < 0.001 vs. 25 μg/mL G. elata group; ##p < 0.01 vs. 50 μg/mL G. elata group
긴까막살 추출물이 3T3-L1 세포 생존율에 미치는 영향
긴까막살 추출물이 3T3-L1 세포 생존율에 미치는 영향을 확인하기 위해 MTT assay를 수행하였다. MTT시약은 살아있는 세포의 미토콘드리아에 존재하는 reductase에 의해 적자색을 띠는 불용성의 formazan으로 전환됨에 따라 세포 독성 및 증식 평가에 주로 사용된다(Park et al. 2011). 긴까막살 추출물을 농도별로 3T3-L1세포에 처리하여 48 또는 72시간 동안 배양한 후 세포 생존율을 측정한 결과, 48시간 동안 처리한 긴까막살 추출물 25, 50 μg/mL에 의한 세포 생존율은 대조군과 유사하였으나 100, 200 μg/mL 농도로 처리한 군에서는 대조군 대비 각각 약 17%, 30% 증가하였다. 동일한 농도의 긴까막살 추출물을 72시간 동안 처리한 결과에서는 세포 생존율이 대조군 대비 각각 약 16, 21%, 32%, 33% 증가하였으며 긴까막살 추출물 100, 200 μg/mL은 48 또는 72시간 동안 세포 증식을 약 30% 증가 수준으로 유지하는 것으로 나타났다(Fig. 2). 이와 같은 결과를 통해 긴까막살 추출물은 3T3-L1세포에 독성을 유발하지 않았음을 확인하였고 유효성 평가를 위한 농도를 100, 200 μg/mL로 설정하였다.
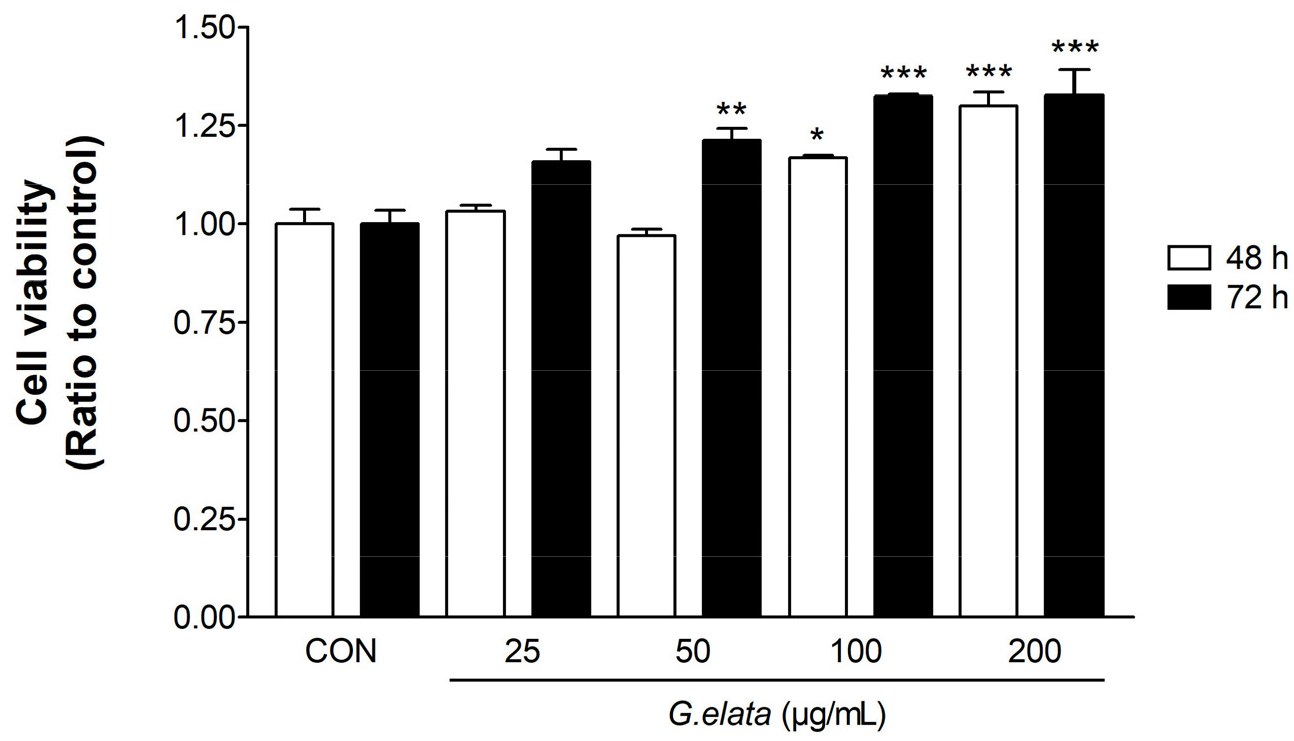
Fig. 2.
Effect of the G. elata extract on the viability of 3T3-L1 pre-adipocytes. The cells were treated with various concentrations of the extract (25, 50, 100, 200 μg/mL) for 48 or 72 h, and the cell viability was determined using the MTT assay. The G. elata extract showed no cytotoxicity but instead promoted cell proliferation at both 48 and 72 h. Data are expressed as mean ± SEM (n = 4). *p < 0.05, **p < 0.01, ***p < 0.001 vs. control (without G. elata extract)
긴까막살 추출물의 지방세포형성 억제 효능
지방세포형성(adipogenesis)이란 전지방세포(preadipocyte)가 성숙한 지방세포(adipocyte)로 분화되는 과정을 말한다. 이는 지질의 축적을 비롯하여 대사, 내분비계, 체온 조절 등 항상성 유지를 위해 필수적이지만, 병리적 상태에서의 과도한 지방세포생성은 산화적 스트레스를 유발하고 염증 전 단계 상태, 혈관신생, 아디포카인 분비 등을 유도하여 신체에 해로운 작용을 나타낸다(Hafidi et al. 2019). 특히 비만 상태에서의 지방조직의 비정상적인 확장은 기존 지방세포의 크기 증가 또는 새로운 지방세포의 분화를 통한 지방세포 수 증가와 관련이 있으며 지방세포형성 억제는 비만 치료를 위한 접근법으로 제시되고 있다(Jakab et al. 2021). 분화된 지방세포는 축적된 지질을 중성지방 형태로 저장하기 위해 인지질 단일층으로 둘러싸인 지방구(lipid droplet)를 형성하며 이러한 지방구의 형성 및 증가는 지방세포형성의 핵심 지표로 간주된다(Hong et al. 2022). 긴까막살 추출물의 지방세포형성 억제 효능을 평가하기 위해 3T3-L1 전지방세포의 분화를 유도함과 동시에 긴까막살 추출물을 7일간 처리한 후 소수성 시약인 Oil red O를 이용하여 생성된 지방구를 염색하였다. Fig. 3에서 나타낸 바와 같이, 분화 유도 배지만 처리한 군에서는 지방구 형성이 뚜렷하게 증가되었으나 긴까막살 추출물 100, 200 μg/mL을 함께 처리한 군에서는 분화 유도 배지만 처리한 군 대비 지방구 형성이 각각 10.2%, 26.7% 감소하였다. 이와 같은 결과를 Fig. 1의 세포 생존율 결과와 비교해 보면, 긴까막살 추출물 100, 200 μg/mL에 의해 3T3-L1 세포 생존율이 증가하였으므로, 긴까막살 추출물에 의한 중성지방 축적 감소는 세포 수 감소가 아닌 지방세포의 분화 과정을 직접적으로 억제함으로써 나타난 결과일 것으로 사료된다.
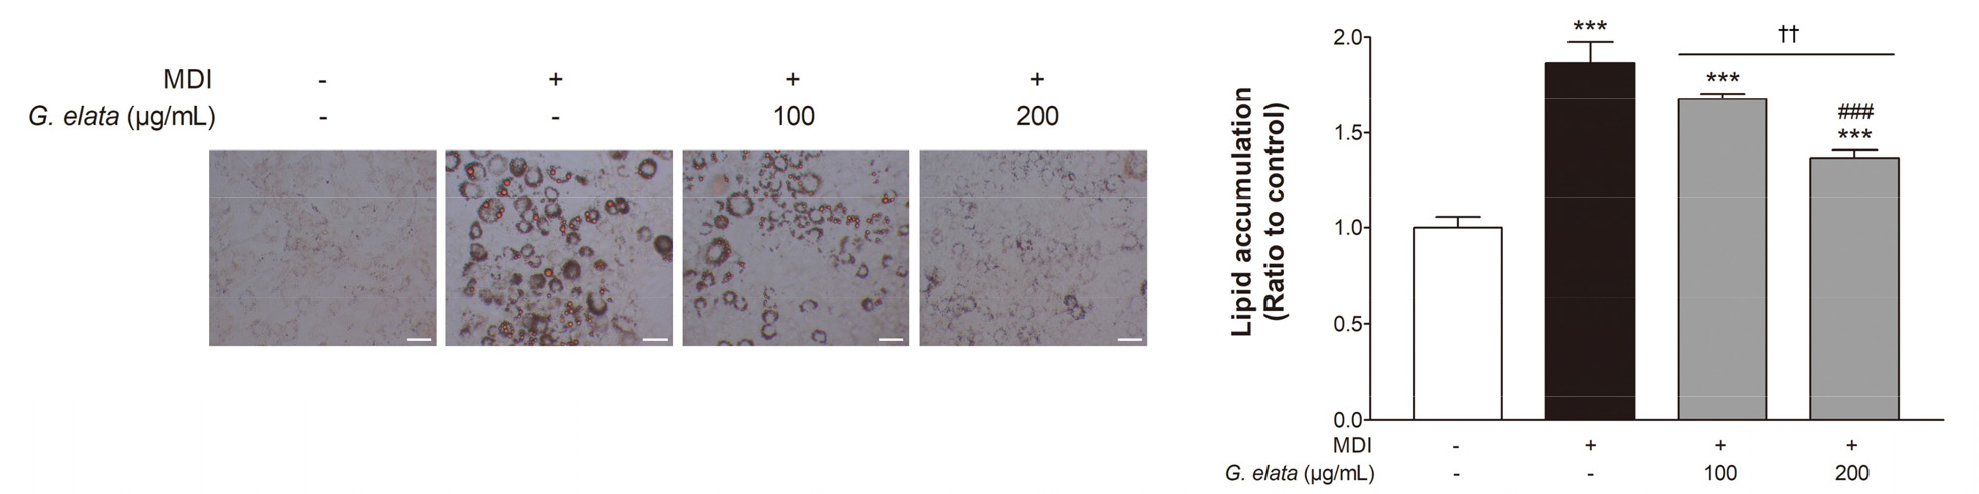
Fig. 3.
Inhibitory effect of the G. elata extract on adipogenesis in 3T3-L1 cells. Differentiation of 3T3-L1 pre-adipocytes into adipocytes was induced by incubation with MDI (0.5 mM IBMX, 1 μM DEX, 1 μg/mL insulin) for 2 days, followed by treatment with DMEM containing insulin (1 μg/mL) for an additional 5 days. The G. elata extract (100 or 200 μg/mL) was co-treated during the entire 7-day differentiation period. Lipid accumulation, a hallmark of adipogenesis, was significantly inhibited by the G. elata extract. ***p < 0.001 vs. negative control (without MDI or G. elata extract); ###p < 0.001 vs. MDI-only-treated group; ††p < 0.01 vs. 100 μg/mL G. elata extract-treated group. Scale bar = 40 μm
긴까막살 추출물의 지방세포 내 ROS 생성 억제 효능
지방세포형성 과정 중에 발생되는 ROS는 초기 분화 과정에서 peroxisome proliferator-activated receptor γ (PPARγ), CCAAT/enhancer-binding proteins (C/EBPs)와 같은 전사 인자의 발현을 유도하여 지방세포로의 분화를 촉진시킴에 따라 지방 생성 억제 및 항비만을 위한 주요 표적으로 알려져 있다(Lee et al. 2009; Yoon et al. 2012; Park and Chung 2024). 본 연구에서는 긴까막살 추출물이 지방세포의 분화 과정 중에 발생되는 ROS 생성에 미치는 영향을 평가하기 위해 DCFH-DA assay를 수행하였다. DCFH-DA는 세포막 내로 유입된 후 세포 내 esterase에 의해 DCFH로 전환되며, 이는 ROS에 의해 산화되어 형광물질인 DCF로 전환됨에 따라 세포 내 ROS 생성량을 측정하기 위해 사용되는 대표적인 시약이다(Ng and Ooi 2021). 3T3-L1 세포에 긴까막살 추출물과 분화 유도 배지를 7일간 처리한 후 세포 내 ROS 생성량을 측정한 결과, 분화 유도에 의해 ROS 생성이 유의하게 증가함을 확인하였다. 반면, 긴까막살 추출물 100, 200 μg/mL을 처리한 군에서는 분화 유도 배지만 처리한 군 대비 ROS 생성이 각각 약 25.03%, 34.55% 감소하였다(Fig. 4). 이러한 결과는 긴까막살 추출물의 지방세포의 분화 및 지방 축적 억제 효능이 분화 과정에서 발생하는 ROS 생성 억제와 관련이 있을 가능성을 제시한다. 체내에는 ROS에 의한 산화적 스트레스를 억제하기 위해 미토콘드리아 내 superoxide dismutase, catalase, glutathione peroxidase와 같은 효소적 항산화 시스템이 존재한다(Birben et al. 2012). Fig. 1의 MTT assay 결과에서 긴까막살 추출물은 3T3-L1 세포 증식을 촉진하는 것으로 나타났는데, 이는 세포 수 및 미토콘드리아 활성 증가에 의해 MTT가 환원형인 formazan으로의 전환이 촉진된 결과로 해석할 수 있다. 이러한 결과들을 종합해보면, 긴까막살 추출물의 ROS 생성 억제 효능은 미토콘드리아 수 및 활성 증가와 관련이 있을 것으로 사료되며 이와 관련하여 긴까막살 추출물이 미토콘드리아의 생합성을 조절에 관여하는 AMP-activated protein kinase (AMPK)/ sirtuin 1 (SIRT1)/ peroxisome proliferator-activated receptor gamma coactivator 1-α (PGC-1α)등의 신호전달기전(Chen et al. 2025)과 항산화 방어 시스템에 미치는 메커니즘을 규명하기 위한 추가적인 연구가 필요할 것으로 판단된다.
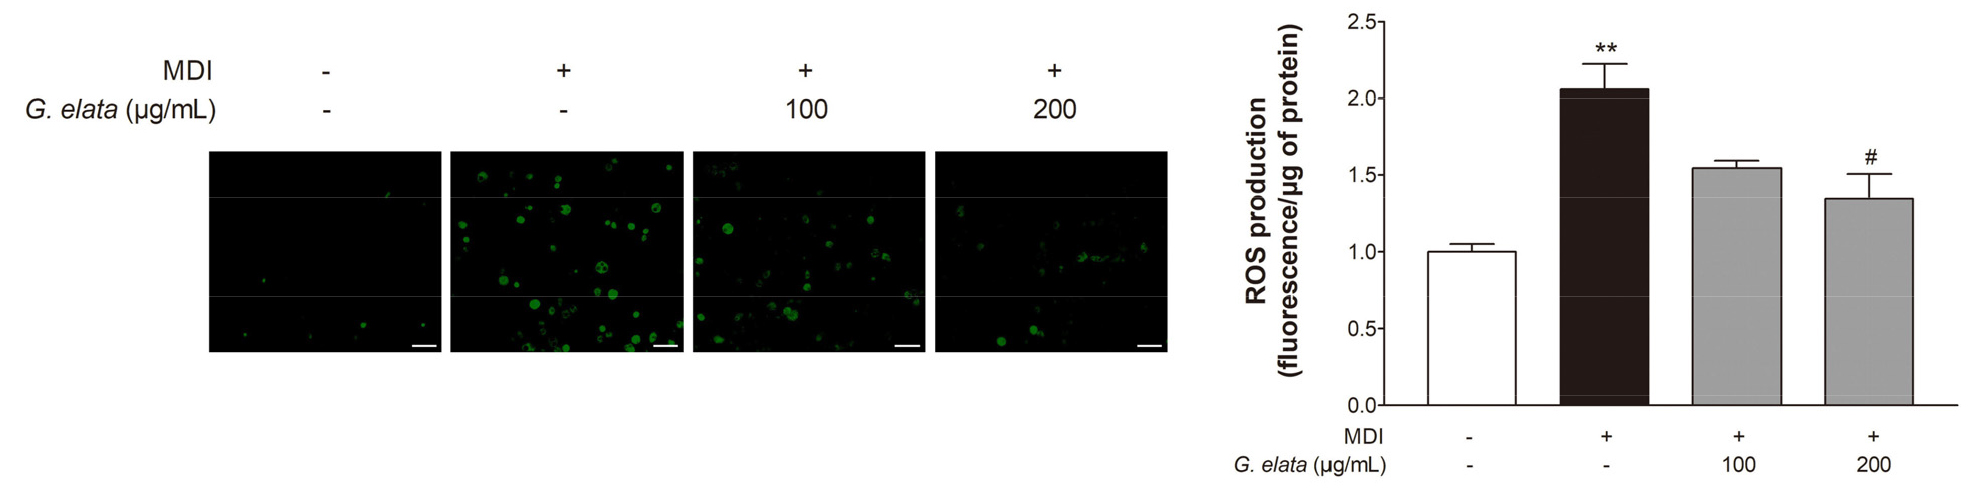
Fig. 4.
Inhibitory effect of the G. elata extract on intracellular ROS production during 3T3-L1 differentiation. The cells were co-treated with the extract (100 or 200 μg/mL) during the entire 7-day differentiation period and on day 7, intracellular ROS production was measured using the DCFH-DA assay. ROS levels were significantly increased in the MDI-induced group; however, they were reduced by treatment with the G. elata extract. This result correlates with the inhibition of lipid accumulation observed in Fig. 3. **p < 0.01 vs. negative control (without MDI or G. elata extract); #p < 0.05 vs. MDI-only-treated group. Scale bar = 40 μm
긴까막살 추출물에 의한 지방세포 내 유전자 발현 변화
전지방세포에서 지방세포로의 분화는 호르몬과 리간드의 작용에 의해 조절된다. Insulin은 insulin 수용체에 작용하여 phosphoinositide 3-kinase (PI3K)/ protein kinase B (AKT)/ mammalian target of rapamycin (mTOR) 신호전달경로를 활성화함으로써 분화 중인 전지방세포로의 포도당 흡수를 촉진시키며, 전사 인자인 sterol regulatory element-binding protein-1c (SREBP-1c)의 발현을 유도하여 지방 생성(lipogenesis)을 자극한다. 한편, glucocorticoid는 glucocorticoid 수용체에 결합하여 C/EBPs 및 PPARγ와 같은 지방세포 분화의 핵심 전사 인자의 유전자 발현을 촉진시키고 insulin에 의한 신호전달을 강화함으로써 초기 지방세포생성을 강력하게 조절한다(Nunn et al. 2022; Ahmad et al. 2020). 3T3-L1 전지방세포의 분화 과정에서 긴까막살 추출물에 의한 전사 인자의 발현 변화를 평가하기 위해 실시간 중합효소 연쇄반응을 수행하였다. Fig. 5에 나타낸 바와 같이, 긴까막살 추출물 100, 200 μg/mL에 의해 SREBP-1c mRNA 발현이 분화 유도군 대비 각각 약 29.68%, 35.78% 감소하였으며 SREBP-1c 에 의해 발현이 조절되는 PPARγ mRNA 발현은 긴까막살 추출물 200 μg/mL에 의해 약 38.66% 감소하였다. 또한, PPARγ와 상호작용을 이루는 C/EBPα의 mRNA 발현도 긴까막살 추출물 100, 200 μg/mL에 의해 각각 약 14.99%, 63.81% 감소함으로써 긴까막살 추출물은 지방세포의 분화에 관여하는 핵심 전사 인자들의 발현을 억제함을 확인하였다. PPARγ와 C/EBPα의 조절에 의해 분화된 지방세포에서는 fatty acid synthase (FAS)의 발현이 유도되어 지방산 합성이 촉진되고 지방산 운반에 관여하는 adipocyte fatty acid-binding protein (aP2), 그리고 지방산을 중성지방으로 최종적으로 저장하는 diacylglycerol O-acyltransferase 2 (DGAT2)의 발현이 뚜렷하게 증가되어 성숙한 지방세포가 된다(Cristancho and Lazar 2011; Zhang et al. 2022). 긴까막살 추출물 100, 200 μg/mL 처리에 의해 분화가 유도된 3T3-L1 지방세포 내 FAS mRNA 발현이 각각 약 33.48%, 52.24% 감소하였으며 DGAT2 mRNA 발현이 각각 약 38.57%, 80.55% 감소하였고 이는 Fig. 3에서 제시한 긴까막살 추출물에 의한 중성지방의 감소와 상관성이 있음을 확인하였다. 반면, aP2 mRNA의 경우, 지방세포에서 긴까막살 추출물에 의해 약간 증가한 경향이 나타났다. 그 원인으로는 지방 생성 억제에 따른 보상적 기전을 고려해 볼 수 있다. Mita et al. (2015)의 연구에 따르면, aP2는 지방세포 내 지방분해(lipolysis) 자극 및 대사 신호에 민감하게 반응하여 조절되는 인자로 보고된 바 있다. 본 연구 결과에서 긴까막살 추출물 처리에 의해 FAS와 DGAT2 mRNA 발현 감소와 더불어 세포 내 지질 축적이 억제되었음에도 불구하고 aP2 mRNA 발현이 증가한 것은 부족해진 세포 내 지방산을 보완하고자 외부로부터의 지방산 유입을 활성화하기 위한 세포 차원의 보상적 대응으로 작용했을 가능성을 고려해 볼 수 있다. 따라서, 긴까막살 추출물은 단순한 지방세포 분화 억제를 넘어 세포 내 지방 대사 경로를 유기적으로 조절하는 것으로 사료되며 이와 관련된 구체적인 메커니즘을 규명하기 위해 추가적인 연구가 필요할 것으로 판단된다.
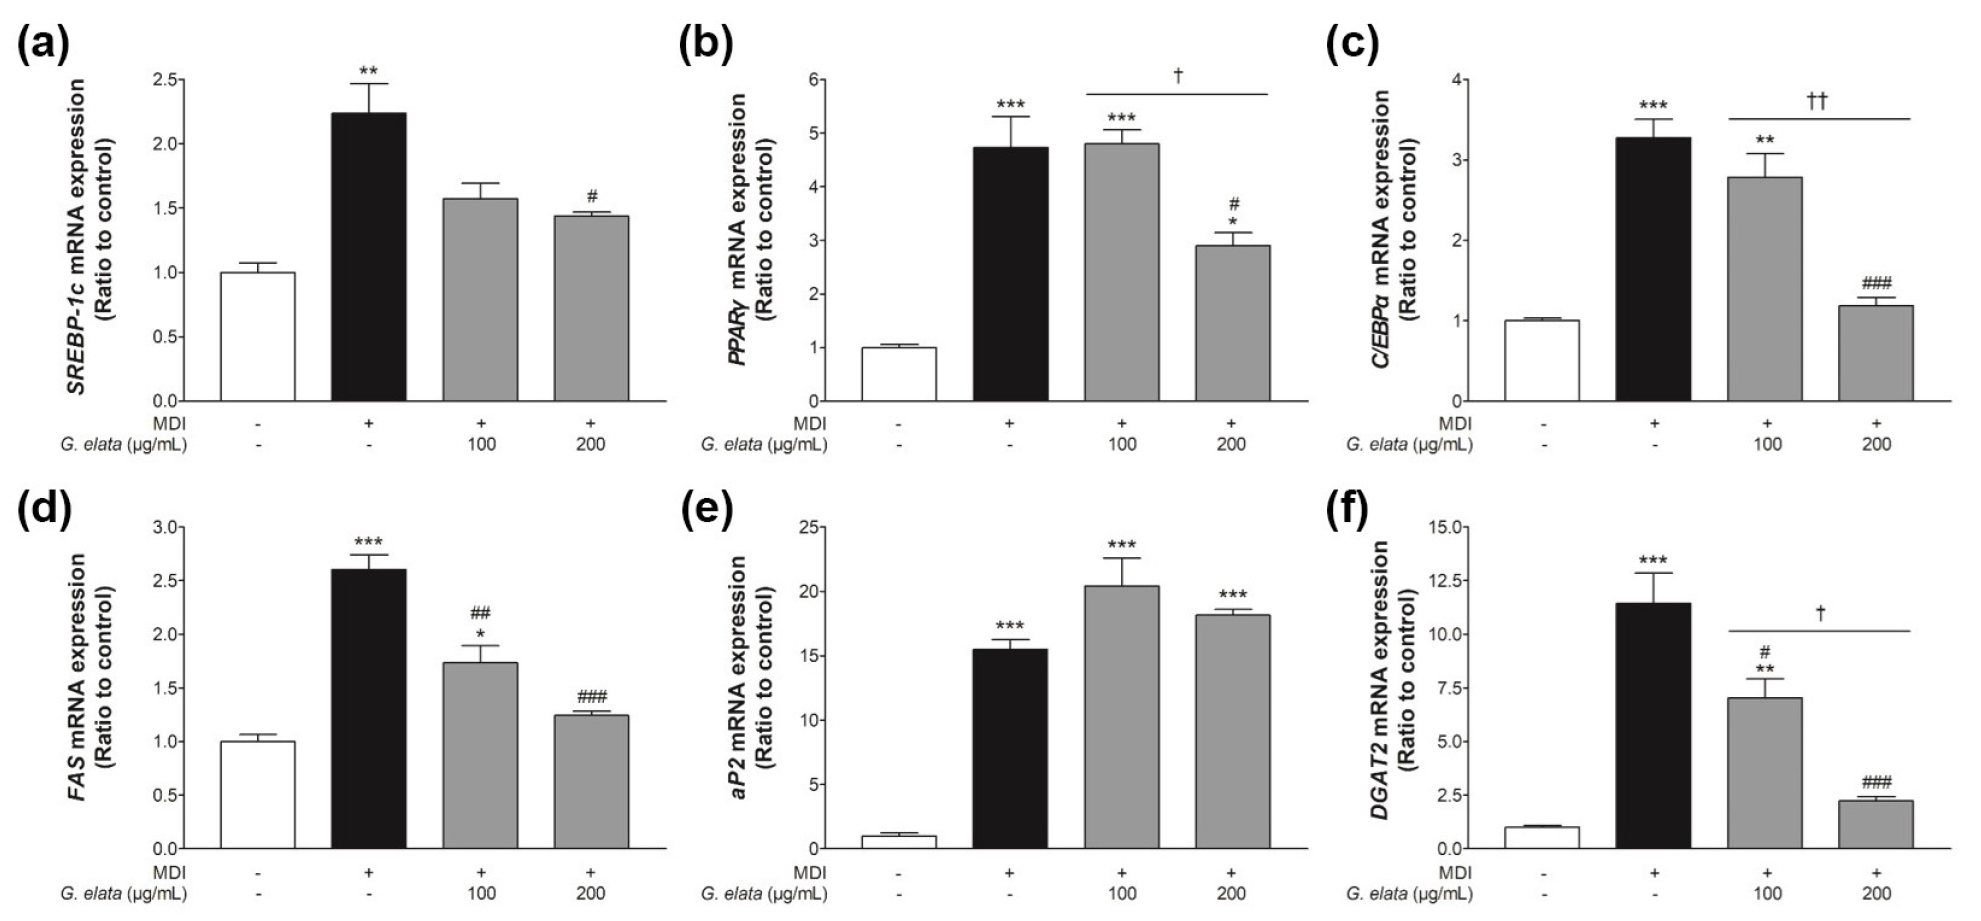
Fig. 5.
Effect of the G. elata extract on gene expression in differentiated 3T3-L1 cells. To investigate the underlying mechanism of the anti-obesity effect of the G. elata extract, mRNA expression levels in adipocytes were evaluated using quantitative real-time PCR. The mRNA expression levels of transcription factors that regulate early-stage adipogenesis, including SREBP-1c (a), PPARγ (b), and C/EBPα (c), were significantly downregulated by the G. elata extract (100 or 200 μg/mL). In addition, the expression levels of FAS (d) and DGAT2 mRNA (f), which are involved in fatty acid synthesis and storage, respectively, were also decreased. Interestingly, the mRNA level of aP2 (e) was slightly induced by the extract. *p < 0.05, **p < 0.01, ***p < 0.001 vs. negative control (without MDI or G. elata extract); #p < 0.05, ##p < 0.01, ###p < 0.001 vs. MDI-only-treated group; †p < 0.05, ††p < 0.01 vs. 100 μg/mL G. elata extract-treated group
4. 결 론
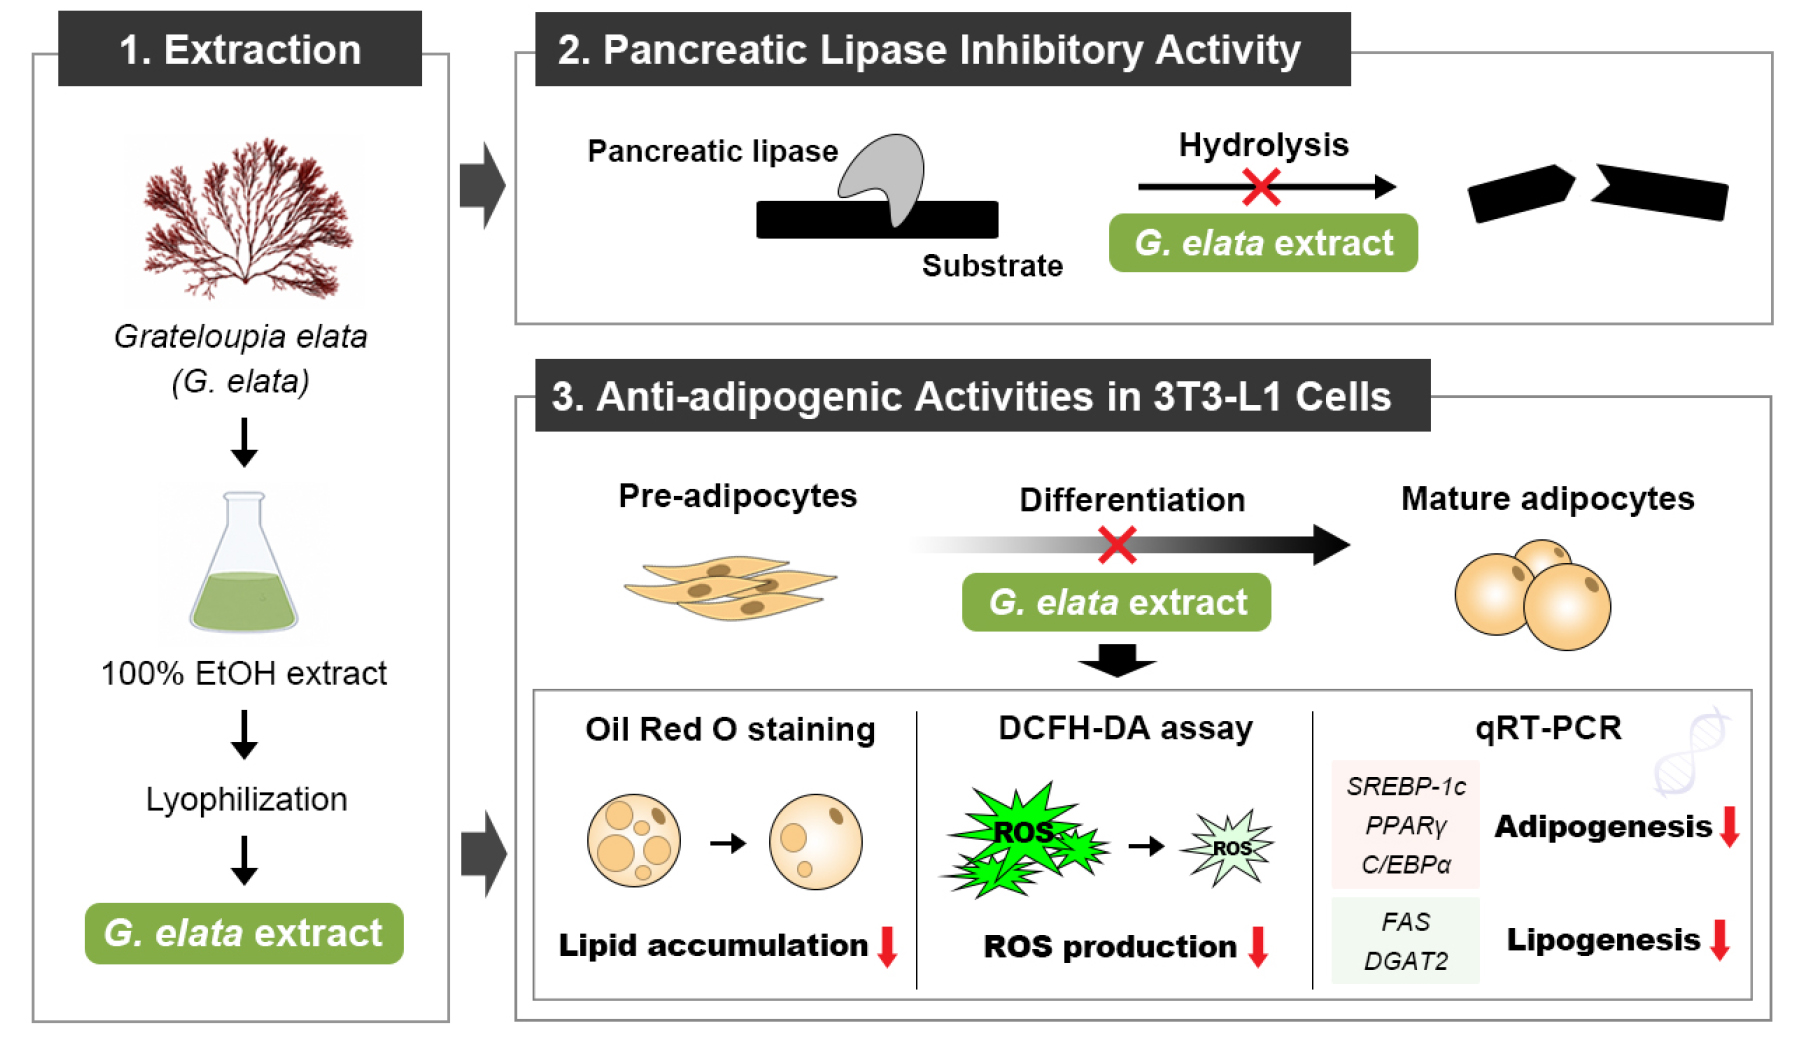
본 연구는 긴까막살 추출물의 항비만 활성을 검증하기 위해 지방분해효소 저해 활성과 지방세포분화 억제 효능을 평가하였다. 긴까막살 추출물은 중성지방의 흡수에 관여하는 pancreatic lipase 활성을 농도 의존적으로 저해하는 것으로 나타나 체내 지방흡수를 억제할 것으로 예상된다. 한편, 3T3-L1 세포를 이용한 세포 수준의 평가에서 긴까막살 추출물은 3T3-L1 세포 증식을 촉진시키는 것으로 나타났다. 이러한 경향은 분화가 유도된 지방세포 내에서 긴까막살 추출물에 의한 중성지방 감소 효능이 세포 독성에 의한 것이 아니라 분화 과정 억제에 기인한 것임을 보여준다. 또한, 분화 과정 중에 발생하는 ROS가 긴까막살 추출물에 의해 유의하게 감소한 것은 세포 증식에 따른 미토콘드리아 수 및 활성 증가와 관련이 있을 가능성이 있다. ROS는 지방세포의 분화 초기 단계에서 PPARγ, C/EBPs와 같은 전사 인자의 발현을 유도하는 것으로 알려져 있는데, 긴까막살 추출물은 ROS 생성 억제와 더불어 SREBP-1c, PPARγ 및 C/EBPα mRNA 발현도 유의하게 억제하는 것으로 나타났다. 나아가, 지방세포 분화 중기 및 후기 단계에서 발현되어 지방세포 내 지방산의 합성, 저장에 관여하는 FAS, DGAT2 mRNA 발현도 유의하게 감소하였다. 반면, 지방산의 운반에 관여하는 aP2 mRNA발현이 다소 증가한 경향이 나타난 것은 지방 생성 및 저장 억제에 따른 세포 내 지방 부족을 보완하고 지방 대사의 항상성을 조절하기 위한 결과로 사료된다. 이러한 결과를 종합하면, 긴까막살 추출물은 췌장 지방분해효소의 활성을 저해하고 ROS 생성, 지방세포 분화 및 지방 생성을 억제함으로써 항비만 활성을 나타내는 해양생물자원임을 확인하였다(Fig. 6).
다만, 본 연구에서 제시한 긴까막살 추출물의 항산화, 지방 대사 및 항상성 조절에 관한 구체적인 메커니즘을 규명하기 위해서는 다음과 같은 후속 연구들이 필요할 것으로 판단된다. 첫째, 긴까막살 추출물에 의한 AMPK/ SIRT1/PGC-1α 등 미토콘드리아 생합성을 조절하는 신호전달기전의 활성과 SOD, catalase, GPx 등 항산화 효소의 활성을 평가할 필요가 있다. 둘째, 지방 대사 항상성에 미치는 영향을 확인하기 위해 지방세포 분화, 지방 합성 및 저장뿐만 아니라 지방분해(lipolysis)와 관련된 인자의 발현을 추가적으로 확인할 필요가 있다. 아울러, 긴까막살 추출물을 항비만 기능성 소재로 실용화하기 위해서는 유효성분 규명 및 표준화가 이루어져야 하며, 이를 위해 극성에 따른 분획물 제조, HPLC, LC/MS 등을 이용한 성분 분석, 활성 검증 및 지표 성분 설정을 통한 추출 조건 확립이 필요할 것으로 사료된다. 또한, 향후 실제 임상 적용을 위해 고지방식이로 유도된 비만 동물 모델에서의 항비만 효능 및 유효 용량 확인과 독성시험 등을 통한 안전성 평가 등의 후속 연구가 순차적으로 이루어져야 할 것으로 판단된다.